호지킨-헉슬리 모델
모델 1
신경 세포neuron에서 활동 전위action potential을 설명하기 위한 지배 방정식을 호지킨-헉슬리 모델Hodgkin–Huxley model이라 한다. $$ C_{m} \dot{V} = - g_{\text{Na}} \left( V - V_{\text{Na}} \right) - g_{\text{K}} \left( V - V_{\text{K}} \right) - g_{\text{L}} \left( V - V_{\text{L}} \right) + I_{\text{app}} $$
변수
- $V(t)$: $t$ 시점에서 세포막cell membrane의 전위potential를 나타낸다.
파라미터
- $C_{m} = 1$: 세포막의 정전용량capacitance이다.
- $g_{\text{Na}}$, $g_{\text{K}}$, $g_{\text{L}}$: 각각 나트륨 이온 채널sodium ion channel, 칼륨 이온 채널potassium ion channel, 유출 채널leak channel의 전도도conductance다.
- $V_{\text{Na}}$, $V_{\text{K}}$, $V_{\text{L}}$: 각각 나트륨 이온 채널, 칼륨 이온 채널, 유출 채널의 평형전위equilibrium potential
- $I_{\text{app}}$: 세포막에 인가applied된 전류다.
설명 2
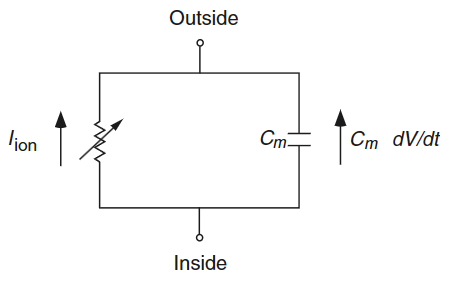
세포는 막에 있는 이온채널을 통해 내외부로 이온을 이동시켜 전류를 발생시키고 생리적인 기능을 수행한다. 이 때 세포를 일종의 축전기capacitor로 보면 세포막은 세포 내부와 외부를 분리하는 절연체insulator가 된다. 절연체의 정전용량은 축전기를 지나는 전하량과 전압의 비인 $C_{m} = Q / V$ 로 정의되며, 전류는 전하량의 변화율인 $dQ / dt$ 이므로 다음과 같은 상미분방정식으로 나타낼 수 있다. $$ C_{m} {\frac{ d V }{ d t }} + I_{\text{ion}} = 0 $$ 여기서 $V$ 는 보통 세포 안의 전위 $V_{i}$ 와 세포 밖의 전위 $V_{e}$ 의 차이인 $V = V_{i} - V_{e}$ 로 둔다. 여기서 이온의 종류마다 전도도와 평형전위가 다를텐데, 특정한 이온 $S$ 에 따른 전류 $I_{S}$ 는 다음과 같이 $V$ 에 $S$ 에 대응되는 전도도 $g_{S}$ 가 곱해져서 선형적으로 비례하며 평형전위 $V_{S}$ 보다 낮으면 전위를 높이고 $V_{S}$ 보다 높으면 전위를 낮추는 방식으로 가정한다. $$ I_{S} = g_{S} \left( V - V_{S} \right) $$
호지킨과 헉슬리는 오징어의 거대 축삭giant axon을 탐구하며 $I_{\text{ion}}$ 을 포타슘potassium $\text{K}$ 과 나트륨sodium $\text{Na}$ 의 두 가지 이온에 대한 전류로 독립적으로 분해한 후 나머지는 유출leak 전류로 두었다. 따라서 $I_{\text{ion}} = I_{\text{Na}} + I_{\text{K}} + I_{\text{L}}$ 이고, 우변에 세포막에 인가된 전류에 대한 항 $I_{\text{app}}$ 를 포함했다. 실제 그들의 연구에서는 전도도를 일정한 상수로 두지 않고 이온 채널의 열고 닫힘을 반영하는 세 개의 변수를 추가하게 된다.
포타슘 전도도
$$ g_{\text{K}} = \bar{g}_{\text{K}} n^{4} $$ 포타슘 전도도는 포타슘 활성화activation을 반영하기 위한 변수로써, 생리학적인 이유보다는 실험 데이터에 맞는 어떤 변수의 거듭제곱 중 가장 적은 거듭제곱이 $4$ 였기 때문에 $n^{4}$ 로 두었다. $\bar{g}_{\text{K}}$ 는 또다른 상수다.
소듐 전도도
$$ g_{\text{Na}} = \bar{g}_{\text{Na}} m^{3} h $$ 소듐 전도도는 같은 소듐이라도 다르게 작동하는 두 종류의 변수로써 소듐 활성화 변수 $m$ 과 소듐 비활성화 변수 $h$ 에 실험 데이터를 맞추었다.
최종 모델
결과적으로, 호지킨-헉슬리 모델은 다음과 같이 네 개의 변수에 대한 상미분방정식이면서 대단히 복잡한 모델이 된다. $$ \begin{align*} C_{m} \dot{V} =& - \bar{g}_{\text{Na}} m^{3} h \left( V - V_{\text{Na}} \right) - \bar{g}_{\text{K}} n^{4} \left( V - V_{\text{K}} \right) - \bar{g}_{\text{L}} \left( V - V_{\text{L}} \right) + I_{\text{app}} \\ \dot{m} =& \alpha_{m} (1 - m) - \beta_{m} m \\ \dot{n} =& \alpha_{n} (1 - n) - \beta_{n} n \\ \dot{h} =& \alpha_{h} (1 - h) - \beta_{h} h \end{align*} $$ 여기서 사용된 파라미터는 전위의 경우 단위를 $\mathrm{mV}$, 전류의 경우 단위를 $\mathrm{\mu A / cm^{2}}$ 로 두었고 구체적인 값은 $\bar{g}_{\text{Na}} = 120$, $\bar{g}_{\text{K}} = 36$, $\bar{g}_{\text{L}} = 0.3$, $V_{\text{Na}} = 50$, $V_{\text{K}} = -77$, $V_{\text{L}} = -54.4$ 이었다. $\alpha$ 와 $\beta$ 는 상수가 아니라 다음과 같은 복잡한 함수로 두었다. $$ \begin{align*} \alpha_{m} =& {\frac{ 0.1 \left( 25 - V \right) }{ \exp \left( {\frac{ 25 - V }{ 10 }} \right) - 1 }} \\ \beta_{m} =& 4 \exp \left( - {\frac{ V }{ 18 }} \right) \\ \alpha_{n} =& {\frac{ 0.01 \left( 10 - V \right) }{ \exp \left( {\frac{ 10 - V }{ 10 }} \right) - 1 }} \\ \beta_{n} =& 0.125 \exp \left( - {\frac{ V }{ 80 }} \right) \\ \alpha_{h} =& 0.07 \exp \left( - {\frac{ V }{ 20 }} \right) \\ \beta_{h} =& {\frac{ 1 }{ \exp \left( {\frac{ 30 - V }{ 10 }} \right) + 1 }} \end{align*} $$
사실 세포막의 전위는 종은 물론 개체마다도 다르기 때문에 이렇게 데이터에 맞춘 결과를 막무가내로 일반화할 수는 없지만, 세포막 이온 채널에 대한 수리적인 모델링에 있어서 가장 표준적인 시작점이기도 하다.
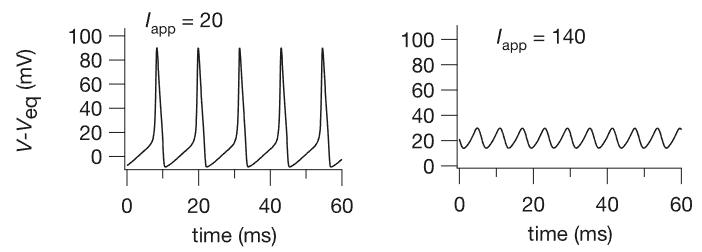
$I_{\text{app}}$ 을 달리하여 $V$ 의 타임에볼루션을 보면 위와 같이 전위가 갑자기 높아졌다가 다시 낮아지는 스파이크spike를 잘 재현하는 것을 확인할 수 있다.