ホジキン・ハクスリーモデル
モデル1
神経細胞neuronにおける活動電位action potentialを説明するための支配方程式をホジキン・ハクスリーモデルHodgkin–Huxley modelという。 $$ C_{m} \dot{V} = - g_{\text{Na}} \left( V - V_{\text{Na}} \right) - g_{\text{K}} \left( V - V_{\text{K}} \right) - g_{\text{L}} \left( V - V_{\text{L}} \right) + I_{\text{app}} $$
変数
- $V(t)$: 時点$t$における細胞膜cell membraneの電位potentialを表す。
パラメータ
- $C_{m} = 1$: 細胞膜の静電容量capacitanceである。
- $g_{\text{Na}}$, $g_{\text{K}}$, $g_{\text{L}}$: それぞれナトリウムイオンチャネルsodium ion channel、カリウムイオンチャネルpotassium ion channel、漏洩チャネルleak channelのコンダクタンスconductanceである。
- $V_{\text{Na}}$, $V_{\text{K}}$, $V_{\text{L}}$: それぞれナトリウムイオンチャネル、カリウムイオンチャネル、漏洩チャネルの平衡電位equilibrium potential
- $I_{\text{app}}$: 細胞膜に印加appliedされた電流である。
説明2
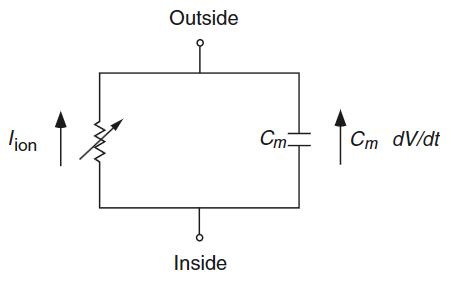
細胞は膜にあるイオンチャネルを通じて内外にイオンを移動させ、電流を発生させて生理的な機能を果たす。このとき細胞を一種のコンデンサcapacitorと見なすと、細胞膜は細胞の内部と外部を分離する絶縁体insulatorとなる。絶縁体の静電容量はコンデンサを通る電荷量と電圧の比である$C_{m} = Q / V$で定義され、電流は電荷量の変化率である$dQ / dt$なので、次のような常微分方程式で表すことができる。 $$ C_{m} {\frac{ d V }{ d t }} + I_{\text{ion}} = 0 $$ ここで$V$は通常、細胞内の電位$V_{i}$と細胞外の電位$V_{e}$の差である$V = V_{i} - V_{e}$とおく。ここでイオンの種類ごとにコンダクタンスと平衡電位は異なるはずだが、特定のイオン$S$による電流$I_{S}$は、次のように$V$に$S$に対応するコンダクタンス$g_{S}$が掛けられて線形に比例し、平衡電位$V_{S}$より低ければ電位を上げ、$V_{S}$より高ければ電位を下げるという形で仮定する。 $$ I_{S} = g_{S} \left( V - V_{S} \right) $$
ホジキンとハクスリーはイカの巨大軸索giant axonを研究する中で、$I_{\text{ion}}$をカリウムpotassium$\text{K}$とナトリウムsodium$\text{Na}$の二種類のイオンによる電流に独立に分解し、残りを漏洩leak電流とした。したがって$I_{\text{ion}} = I_{\text{Na}} + I_{\text{K}} + I_{\text{L}}$であり、右辺に細胞膜に印加された電流に関する項$I_{\text{app}}$を含めた。実際の彼らの研究では、コンダクタンスを一定の定数とはせず、イオンチャネルの開閉を反映する三つの変数を追加することになる。
カリウムコンダクタンス
$$ g_{\text{K}} = \bar{g}_{\text{K}} n^{4} $$ カリウムコンダクタンスはカリウムの活性化activationを反映するための変数であり、生理学的な理由というよりは、実験データに合うある変数のべき乗のうち最も小さいべき指数が$4$だったために$n^{4}$とおいた。$\bar{g}_{\text{K}}$はまた別の定数である。
ナトリウムコンダクタンス
$$ g_{\text{Na}} = \bar{g}_{\text{Na}} m^{3} h $$ ナトリウムコンダクタンスは、同じナトリウムでも異なる働きをする二種類の変数として、ナトリウム活性化変数$m$とナトリウム不活性化変数$h$に実験データを合わせた。
最終モデル
結果として、ホジキン・ハクスリーモデルは次のように四つの変数に関する常微分方程式であり、非常に複雑なモデルとなる。 $$ \begin{align*} C_{m} \dot{V} =& - \bar{g}_{\text{Na}} m^{3} h \left( V - V_{\text{Na}} \right) - \bar{g}_{\text{K}} n^{4} \left( V - V_{\text{K}} \right) - \bar{g}_{\text{L}} \left( V - V_{\text{L}} \right) + I_{\text{app}} \\ \dot{m} =& \alpha_{m} (1 - m) - \beta_{m} m \\ \dot{n} =& \alpha_{n} (1 - n) - \beta_{n} n \\ \dot{h} =& \alpha_{h} (1 - h) - \beta_{h} h \end{align*} $$ ここで用いられたパラメータは、電位の単位を$\mathrm{mV}$、電流の単位を$\mathrm{\mu A / cm^{2}}$とし、具体的な値は$\bar{g}_{\text{Na}} = 120$、$\bar{g}_{\text{K}} = 36$、$\bar{g}_{\text{L}} = 0.3$、$V_{\text{Na}} = 50$、$V_{\text{K}} = -77$、$V_{\text{L}} = -54.4$であった。$\alpha$と$\beta$は定数ではなく、次のような複雑な関数とした。 $$ \begin{align*} \alpha_{m} =& {\frac{ 0.1 \left( 25 - V \right) }{ \exp \left( {\frac{ 25 - V }{ 10 }} \right) - 1 }} \\ \beta_{m} =& 4 \exp \left( - {\frac{ V }{ 18 }} \right) \\ \alpha_{n} =& {\frac{ 0.01 \left( 10 - V \right) }{ \exp \left( {\frac{ 10 - V }{ 10 }} \right) - 1 }} \\ \beta_{n} =& 0.125 \exp \left( - {\frac{ V }{ 80 }} \right) \\ \alpha_{h} =& 0.07 \exp \left( - {\frac{ V }{ 20 }} \right) \\ \beta_{h} =& {\frac{ 1 }{ \exp \left( {\frac{ 30 - V }{ 10 }} \right) + 1 }} \end{align*} $$
実際、細胞膜の電位は種はもちろん個体ごとにも異なるため、このようにデータに合わせた結果をむやみに一般化することはできないが、細胞膜イオンチャネルの数理的なモデリングにおいて最も標準的な出発点でもある。
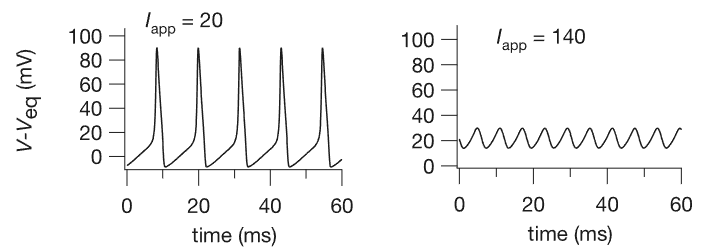
$I_{\text{app}}$を変えて$V$の時間発展を見ると、上のように電位が急に高くなってから再び低くなるスパイクspikeをよく再現していることが確認できる。